
L'angolo del dottorino

Testicolo
(gonade maschile)
Il testicolo è la gonade maschile e rappresenta un organo endocrino e riproduttivo altamente specializzato, deputato alla produzione degli androgeni e alla generazione dei gameti maschili. Questa duplice funzione distingue il testicolo da molte altre ghiandole endocrine, perché nello stesso organo convivono una componente interstiziale steroidogenica, responsabile soprattutto della sintesi di testosterone, e una componente tubulare altamente organizzata, sede della spermatogenesi. La fisiologia testicolare, pertanto, non può essere compresa separando rigidamente endocrinologia e biologia riproduttiva: entrambe dipendono dalla stessa architettura tissutale e dagli stessi meccanismi integrati di regolazione.
La comprensione del testicolo come organo endocrino richiede un’analisi coordinata della sua anatomia funzionale, della microarchitettura dei tubuli seminiferi, dell’istologia delle cellule somatiche specializzate e dei principi fisiologici che governano steroidogenesi, barriera emato-testicolare e maturazione germinale. In questa pagina il testicolo viene quindi considerato come un sistema biologico complesso, nel quale struttura e funzione coincidono in modo particolarmente stretto, fornendo le basi concettuali indispensabili per interpretare correttamente le patologie della funzione gonadica maschile, dell’asse ipotalamo-ipofisi-gonade e della fertilità.
Inquadramento endocrinologico generale del testicolo
Nel sistema endocrino il testicolo rappresenta l’organo periferico dell’asse ipotalamo-ipofisi-gonade che traduce il segnale gonadotropo in due output biologici strettamente connessi: la secrezione di androgeni e il mantenimento della spermatogenesi. Il suo ruolo endocrinologico non si esaurisce nella semplice produzione di testosterone, perché gli ormoni testicolari modulano differenziazione sessuale, sviluppo puberale, massa muscolare, metabolismo osseo, eritropoiesi, distribuzione del tessuto adiposo, funzione sessuale e assetto neurocomportamentale. La rilevanza sistemica dell’organo deriva quindi dal fatto che il segnale androgenico contribuisce al tono biologico complessivo dell’organismo maschile adulto, mentre durante la vita fetale e puberale partecipa a passaggi di sviluppo che non sono sostituibili da altri sistemi endocrini.
Il testicolo è anche un paradigma di endocrinologia “a doppio compartimento”, perché la sua funzione nasce dall’integrazione tra un dominio interstiziale, sede delle cellule di Leydig e della steroidogenesi, e un dominio tubulare, in cui cellule di Sertoli e cellule germinali cooperano per la produzione dei gameti. Questa organizzazione implica che l’output ormonale e quello riproduttivo siano distinti ma non indipendenti. La sintesi di testosterone avviene nell’interstizio, ma l’efficacia biologica del segnale androgenico per la spermatogenesi dipende dalla sua concentrazione intratesticolare, dalla disponibilità locale di proteine leganti e dalla capacità delle cellule di Sertoli di creare un microambiente favorevole alla maturazione germinale. Ne deriva che la funzione testicolare non può essere letta come mera secrezione endocrina nel sangue, bensì come regolazione simultanea di un compartimento sistemico e di un compartimento paracrino locale.
- dominio interstiziale, centrato sulle cellule di Leydig, responsabile della steroidogenesi androgenica e della trasformazione del segnale LH in produzione di testosterone;
- dominio tubulare, costituito dai tubuli seminiferi con cellule di Sertoli e linea germinale, responsabile della nutrizione, protezione e progressione maturativa delle cellule germinali fino alla formazione degli spermatozoi;
- dominio di integrazione asse-dipendente, in cui GnRH, LH, FSH, feedback androgenico, inibina B e segnali paracrini locali regolano trofismo testicolare, steroidogenesi, barriera emato-testicolare e stabilità della spermatogenesi.
Dal punto di vista endocrinologico, il testicolo integra tre domini funzionali complementari:
Il controllo centrale del testicolo dipende dalla secrezione pulsatile di GnRH, che stimola l’ipofisi anteriore a rilasciare LH e FSH. L’LH agisce principalmente sulle cellule di Leydig promuovendo il trasporto intracellulare del colesterolo ai mitocondri e l’attivazione della cascata steroidogenica, mentre l’FSH agisce sulle cellule di Sertoli sostenendone la maturazione funzionale, l’espressione di fattori trofici e la capacità di supportare la linea germinale. Questo assetto non corrisponde a una divisione rigida dei compiti, perché la piena efficienza della spermatogenesi richiede l’azione combinata di FSH e androgeni intratesticolari elevati. Il testicolo risponde quindi al segnale ipofisario con una logica di cooperazione cellulare, più che con una somma di risposte indipendenti.
La regolazione endocrina testicolare è anche profondamente condizionata dall’età biologica. Durante la vita fetale il testicolo contribuisce alla differenziazione sessuale maschile; nel periodo postnatale precoce attraversa una fase di attivazione transitoria dell’asse; nell’infanzia permane in relativa quiescenza; con la pubertà riattiva in modo progressivo steroidogenesi e spermatogenesi. Di conseguenza, il significato endocrinologico del testicolo non è statico, ma varia nel tempo in funzione della maturazione delle cellule somatiche, dell’espansione del compartimento germinale e della ricalibrazione dei feedback centrali. Questa temporalità spiega perché la stessa struttura anatomica assuma ruoli fisiologici diversi nelle varie fasi della vita.
Un ulteriore livello di complessità deriva dal fatto che l’azione del testosterone non coincide soltanto con la concentrazione sierica dell’ormone. Il testicolo produce androgeni per il circolo sistemico, ma mantiene anche concentrazioni intratesticolari molto più elevate, indispensabili per la spermatogenesi. Inoltre parte dell’azione androgenica periferica dipende dalla conversione in diidrotestosterone o in estradiolo nei tessuti bersaglio. Ne consegue che il “segnale testicolare” finale è distribuito tra sintesi locale, disponibilità intratesticolare, trasporto plasmatico e metabolismo periferico, rendendo il testicolo un organo endocrino la cui funzione reale si estende oltre il semplice dato laboratoristico della testosteronemia.
Nel complesso, il testicolo va quindi interpretato come un sistema biologico in cui regolazione centrale, cooperazione tra compartimenti cellulari, modulazione paracrina locale e metabolismo periferico concorrono a generare un output endocrino e riproduttivo continuo ma adattabile. Questa impostazione concettuale è la base necessaria per comprendere il significato funzionale della sua anatomia e della sua particolare organizzazione tubulo-interstiziale.
Anatomia funzionale del testicolo
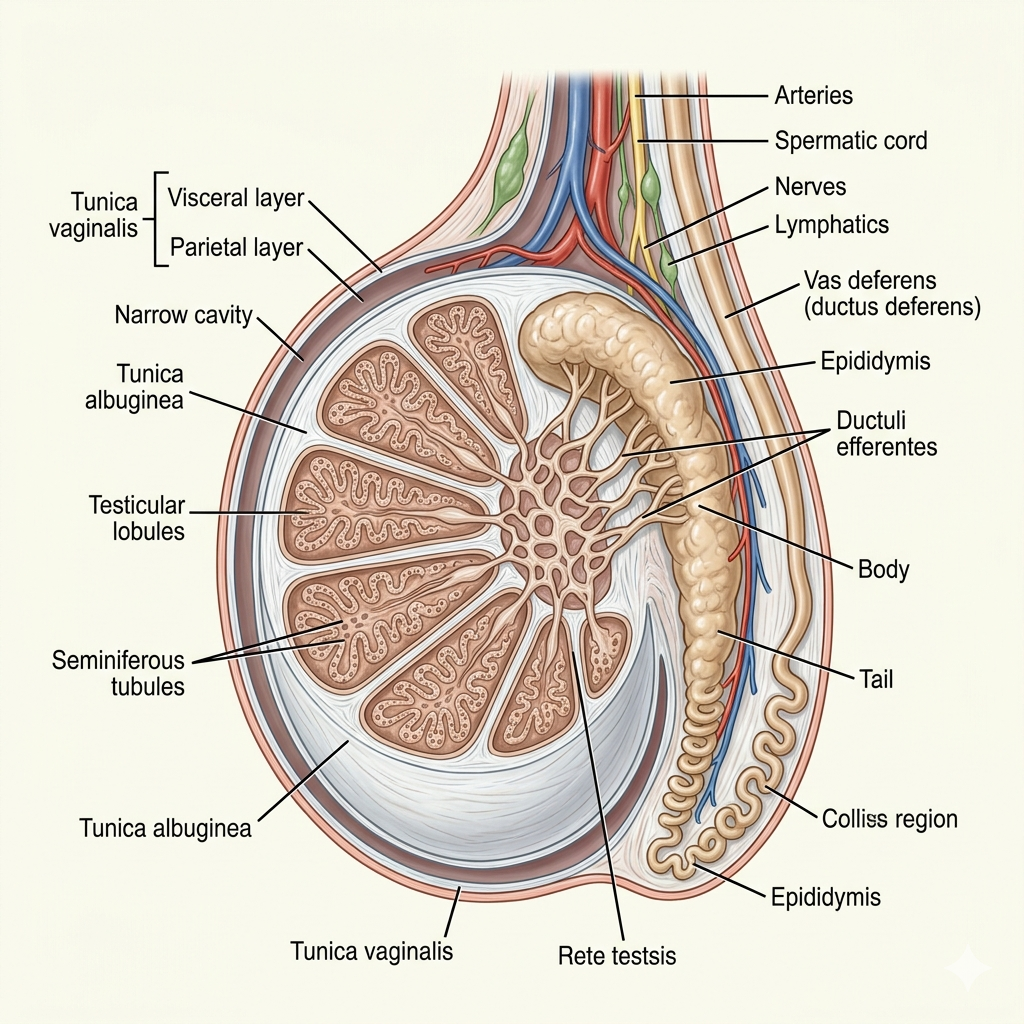
Il testicolo è localizzato nello scroto, sospeso al funicolo spermatico, e questa posizione extra-addominale costituisce già un dato anatomico funzionale di primaria importanza. La collocazione scrotale consente infatti di mantenere una temperatura inferiore a quella corporea centrale, condizione essenziale per l’efficienza della spermatogenesi. Il testicolo non è quindi semplicemente “contenuto” nello scroto, ma ne dipende fisiologicamente: termoregolazione, integrità vascolare e mobilità del parenchima rispetto ai piani circostanti contribuiscono in modo diretto alla sua performance endocrina e riproduttiva. Quando questa relazione anatomico-funzionale si altera, la linea germinale risulta in genere più vulnerabile della steroidogenesi, segnalando una diversa sensibilità dei compartimenti testicolari.
Dal punto di vista macroscopico il testicolo è rivestito da tonaca vaginale e soprattutto da tonaca albuginea, capsula fibrosa densa che conferisce sostegno meccanico al parenchima e invia setti connettivali verso l’interno, suddividendolo in lobuli. Ogni lobulo contiene tubuli seminiferi convoluti che convergono verso i tubuli retti e la rete testis, collegando in modo ordinato la sede di produzione degli spermatozoi con le vie escretrici intratesticolari. Questa organizzazione non ha solo valore anatomico descrittivo, ma stabilisce una gerarchia spaziale tra compartimento di produzione, compartimento di raccolta e compartimento di trasporto, essenziale per comprendere la fisiologia del gamete maschile.
Dal punto di vista funzionale, la caratteristica più rilevante è la vascolarizzazione estremamente specializzata. L’arteria testicolare, generalmente originata dall’aorta addominale, raggiunge il testicolo attraverso il funicolo e si distribuisce in rami capsulari e intraparenchimali che sostengono il metabolismo elevato del tessuto gonadico. Il drenaggio venoso nel plesso pampiniforme non è un semplice ritorno ematico, ma partecipa allo scambio termico controcorrente tra sangue arterioso e venoso, contribuendo alla termoregolazione del parenchima. In tal modo la vascolarizzazione testicolare svolge una doppia funzione, metabolica e termica, coerente con un organo che deve sostenere sia un’intensa attività steroidogenica sia una linea germinale particolarmente sensibile al calore.
Il microcircolo testicolare interessa soprattutto il compartimento interstiziale, dove si trovano cellule di Leydig, fibroblasti, macrofagi e cellule vascolari, mentre il compartimento tubulare resta separato dal sangue da una barriera specializzata. Questa disposizione crea un’asimmetria funzionale fondamentale: le cellule steroidogeniche hanno accesso diretto al compartimento vascolare e possono riversare rapidamente il testosterone nel circolo, mentre il compartimento adluminale dei tubuli viene mantenuto in condizioni rigorosamente controllate. La distanza di diffusione, la disposizione dei vasi attorno ai tubuli e la vicinanza tra interstizio e parete tubulare fanno del testicolo un organo in cui anatomia vascolare e microambiente cellulare sono inseparabili.
L’innervazione autonoma del testicolo svolge prevalentemente un ruolo vasomotorio e modulatore, più che un controllo secretorio diretto. L’attività simpatica contribuisce alla regolazione del flusso ematico, del tono delle strutture lisce peritubulari e, indirettamente, della distribuzione locale di ossigeno e substrati. In termini endocrinologici ciò significa che il controllo neurale non sostituisce quello gonadotropo, ma ne condiziona l’efficienza attraverso il governo dell’ambiente emodinamico. Anche sotto questo aspetto il testicolo conferma di essere un organo in cui la funzione dipende da una precisa organizzazione anatomica, più che da una semplice presenza di cellule endocrine isolate.
In conclusione, l’anatomia testicolare non rappresenta un involucro della funzione ma un suo determinante diretto. La sede scrotale, la capsula albuginea con la sua compartimentazione lobulare, la continuità tra tubuli seminiferi e rete testis, la vascolarizzazione specializzata e il sistema di scambio termico del plesso pampiniforme costituiscono la base strutturale che permette al testicolo di integrare in modo efficiente steroidogenesi e spermatogenesi. Questa cornice prepara alla comprensione della microanatomia tubulare e dell’organizzazione cellulare del parenchima gonadico.
Organizzazione tubulare e microanatomia endocrina
La caratteristica morfologica che definisce il testicolo come organo endocrino-riproduttivo unico è l’organizzazione in tubuli seminiferi, strutture contorte e strettamente impacchettate che occupano la gran parte del parenchima. Il tubulo seminifero non è un semplice condotto, ma una vera unità anatomo-funzionale in cui coesistono sostegno somatico, progressione germinale, controllo barriera-dipendente e segnali paracrini altamente coordinati. In questa logica, la microanatomia tubulare realizza un compromesso sofisticato tra produzione continuativa di gameti, protezione immunologica e integrazione con il compartimento endocrino interstiziale.
L’epitelio seminifero è costituito da cellule di Sertoli e da cellule germinali nei diversi stadi maturativi, disposte secondo una precisa organizzazione spaziale che riflette l’avanzamento della spermatogenesi. Le cellule germinali più immature si collocano in prossimità della membrana basale, mentre gli elementi meiotici e post-meiotici migrano progressivamente verso il lume. Questo gradiente non è solo morfologico, ma rappresenta la traduzione spaziale della maturazione cellulare. Il testicolo, quindi, non separa la spermatogenesi in “reparti” distinti, bensì la distribuisce lungo l’asse basale-luminale del tubulo, consentendo un processo continuo e asincrono che assicura produzione costante di spermatozoi.
Il tubulo è circondato da una lamina propria e da cellule mioidi peritubulari che forniscono sostegno, contribuiscono alla matrice extracellulare e partecipano alla propagazione di segnali meccanici e paracrini. Queste cellule non vanno considerate come un semplice involucro contrattile, perché collaborano alla definizione del microambiente staminale delle spermatogonie e alla regolazione locale della funzione sertoliana. Ne deriva che la parete del tubulo seminifero è un’interfaccia biologica attiva, capace di collegare il compartimento germinale al compartimento interstiziale senza abolirne la necessaria distinzione funzionale.
La microanatomia interstiziale è altrettanto decisiva. Tra i tubuli si colloca il tessuto interstiziale con cellule di Leydig, vasi sanguigni, cellule immunitarie residenti e matrice extracellulare. Questa disposizione permette una rapida immissione nel circolo degli androgeni prodotti, ma crea anche un ambiente paracrino che influenza il funzionamento tubulare. Il testosterone elaborato nell’interstizio deve infatti diffondere verso i tubuli e raggiungere concentrazioni locali elevate per sostenere meiosi e spermiogenesi. La disposizione ravvicinata, ma compartimentata, dei due domini rende il testicolo un organo nel quale distanza, permeabilità e architettura stromale hanno significato endocrinologico diretto.
Un aspetto strutturale fondamentale è la presenza della barriera emato-testicolare, generata soprattutto dalle giunzioni tra cellule di Sertoli in prossimità del versante basale dell’epitelio seminifero. Questa barriera divide il tubulo in un compartimento basale e in un compartimento adluminale, controllando l’accesso di molecole, cellule immunitarie e mediatori circolanti. La sua funzione non è soltanto difensiva. Creando un microambiente distinto, la barriera consente alle cellule germinali meiotiche e post-meiotiche di completare lo sviluppo in condizioni biochimiche finemente regolate. La microanatomia del testicolo, quindi, non separa solo spazi fisici, ma differenzia territori biologici con esigenze metaboliche e immunologiche diverse.
Nel complesso, l’organizzazione tubulare definisce il testicolo come organo che “compartimenta per regolare”. Separando il sangue dal microambiente germinale più maturo, ma mantenendo stretta prossimità con l’interstizio endocrine attivo, la gonade maschile ottiene continuità produttiva, protezione immunologica e precisione maturativa. Questa cornice microanatomica è indispensabile per comprendere l’istologia endocrina del testicolo e la specializzazione delle sue popolazioni cellulari somatiche.
Istologia endocrina:
cellule di Sertoli, cellule di Leydig e compartimento interstiziale
L’istologia testicolare è la traduzione diretta della sua doppia funzione. Il parenchima è composto da una componente tubulare, dominata dalle cellule di Sertoli e dalla linea germinale, e da una componente interstiziale, in cui le cellule di Leydig costituiscono il principale elemento endocrine. Questa duplice organizzazione conferisce al testicolo una complessità superiore a quella di molte altre ghiandole periferiche, perché la produzione ormonale sistemica e la funzione riproduttiva dipendono da popolazioni cellulari diverse, strettamente interdipendenti e immerse in un microambiente stromale altamente specializzato.
Le cellule di Sertoli sono cellule somatiche polarizzate, estese dalla membrana basale al lume del tubulo, e rappresentano l’asse portante dell’epitelio seminifero. Non si limitano a svolgere una funzione di sostegno passivo, ma organizzano fisicamente la linea germinale, ne regolano il nutrimento, il traffico intracellulare, la progressione differenziativa e l’eliminazione dei residui citoplasmatici. Attraverso giunzioni specializzate tra loro e con le cellule germinali, le Sertoli stabiliscono l’architettura del tubulo e controllano la barriera emato-testicolare. La loro biologia è quindi insieme strutturale, trofica, immunologica ed endocrina, perché rispondono all’FSH, ai segnali androgenici e producono mediatori come inibina B, fattori di crescita e proteine leganti gli androgeni.
Le cellule di Leydig, localizzate nell’interstizio tra i tubuli, costituiscono il compartimento steroidogenico del testicolo. Dal punto di vista istologico sono cellule endocrine ricche di apparato mitocondriale e reticolo endoplasmatico liscio, coerentemente con la necessità di trasformare il colesterolo in androgeni. La loro disposizione a stretto contatto con il microcircolo favorisce sia l’ingresso dei substrati steroidogenici sia la rapida immissione nel sangue del testosterone sintetizzato. Tuttavia il loro ruolo non si esaurisce nell’output sistemico, perché una quota rilevante dell’azione androgenica rimane locale, diffondendo verso il compartimento tubulare e contribuendo al mantenimento della spermatogenesi.
Il compartimento interstiziale include inoltre fibroblasti, macrofagi residenti, cellule endoteliali e matrice extracellulare. Questo stroma non è un semplice sostegno, ma un microambiente biologicamente attivo nel quale si intrecciano segnali infiammatori, paracrini, vascolari e metabolici. I macrofagi testicolari, ad esempio, partecipano alla regolazione del tono immunologico locale e interagiscono con le cellule di Leydig; l’endotelio condiziona diffusione dei substrati e cinetica del rilascio ormonale; la matrice extracellulare influenza adesione, polarità e trasduzione meccanica. L’istologia testicolare è quindi un esempio di integrazione massima tra compartimento secretorio, compartimento di sostegno e compartimento immuno-vascolare.
Un ulteriore elemento di valore endocrinologico è la capacità del tessuto testicolare di rimodellarsi in relazione all’età, alla stimolazione gonadotropica e allo stato metabolico generale. Durante lo sviluppo puberale le cellule di Sertoli completano la maturazione, le cellule di Leydig aumentano la capacità steroidogenica e il compartimento germinale si espande progressivamente. In senso opposto, con l’invecchiamento o in condizioni patologiche, possono comparire riduzione dell’efficienza sertoliana, alterazioni della barriera, diminuzione della risposta leydigiana all’LH e rarefazione della spermatogenesi. Comprendere l’istologia endocrina del testicolo significa quindi comprendere insieme la sua efficienza fisiologica e le sue principali vulnerabilità biologiche.
In sintesi, cellule di Sertoli e cellule di Leydig rappresentano due linee somatiche con ruoli distinti ma strettamente cooperativi, immerse in uno stroma interstiziale altamente specializzato. Questa organizzazione istologica spiega perché il testicolo sia capace di sostenere una produzione androgenica stabile e una spermatogenesi continuativa, preparando alla comprensione dei principi fisiologici generali che governano sintesi ormonale, compartimentazione e maturazione germinale.
Fisiologia generale della funzione testicolare
La funzione testicolare può essere compresa come una sequenza continua di processi integrati che collegano regolazione centrale, steroidogenesi interstiziale, supporto sertoliano e progressione germinale. In condizioni fisiologiche, il segnale che orchestra l’attività dell’organo è la secrezione pulsatile di GnRH, che induce il rilascio di LH e FSH da parte dell’ipofisi anteriore. L’LH stimola le cellule di Leydig a convertire il colesterolo in testosterone attraverso l’attivazione di enzimi steroidogenici, mentre l’FSH modula la funzione delle cellule di Sertoli, promuovendo nutrimento, comunicazione paracrina, maturazione della barriera e sostegno della spermatogenesi. Ciò che rende “generale” la fisiologia testicolare non è un singolo passaggio, ma la capacità dell’organo di trasformare un input ipofisario pulsatile in un output androgenico relativamente stabile e in una produzione germinale continua.
Il primo requisito fisiologico è la disponibilità di substrati steroidogenici e di un microcircolo efficiente nel compartimento interstiziale. Le cellule di Leydig utilizzano il colesterolo come precursore e, in risposta all’LH, ne aumentano il trasferimento alla membrana mitocondriale interna, dove si avvia la cascata che porterà alla formazione di testosterone. La steroidogenesi testicolare è quindi una fisiologia della conversione rapida ma finemente regolata, nella quale la disponibilità di colesterolo, l’attività enzimatica e la sensibilità al segnale cAMP-dipendente determinano l’efficienza dell’output androgenico. Il testosterone così prodotto entra nel circolo sistemico, ma una quota diffonde anche localmente, generando concentrazioni intratesticolari elevate indispensabili per la maturazione germinale.
Parallelamente, la fisiologia del compartimento tubulare dipende dalla funzione delle cellule di Sertoli. Queste cellule creano un microambiente specializzato per le spermatogonie, regolano la progressione meiotica e post-meiotica, secernono molecole trofiche, controllano il metabolismo locale e mediano il trasporto dei segnali androgenici all’interno dell’epitelio seminifero. La spermatogenesi non è quindi un evento autonomo delle cellule germinali, ma un processo reso possibile dalla continua attività organizzativa delle Sertoli. In questo senso il testicolo non “produce spermatozoi” come prodotto terminale di una catena lineare, ma mantiene costantemente un ecosistema cellulare capace di generare gameti in modo ordinato.
Una proprietà fisiologica distintiva è la necessità di concentrazioni intratesticolari di testosterone molto superiori a quelle sieriche. Ciò significa che la funzione testicolare non può essere interpretata soltanto sulla base del testosterone circolante, perché la spermatogenesi dipende da un gradiente ormonale locale che viene mantenuto nel microambiente tubulare grazie alla vicinanza tra interstizio e tubulo, alla presenza di proteine leganti gli androgeni e alla compartimentazione creata dalla barriera emato-testicolare. La gonade maschile adotta quindi una strategia endocrina in cui il medesimo ormone sostiene due livelli di funzione, uno sistemico e uno intraparenchimale, con esigenze quantitative molto diverse.
La fisiologia generale testicolare include anche la regolazione di feedback. Il testosterone e i suoi metaboliti esercitano un freno su ipotalamo e ipofisi, modulando la secrezione di GnRH e LH, mentre l’inibina B prodotta dalle cellule di Sertoli partecipa soprattutto al controllo dell’FSH. Questo doppio circuito consente all’asse di percepire sia l’efficienza steroidogenica sia, almeno in parte, l’attività del compartimento tubulare. In tal modo il testicolo non è soltanto un organo “esecutore” del segnale ipofisario, ma invia continuamente informazioni di ritorno che contribuiscono a definire il set-point funzionale dell’asse riproduttivo maschile.
Nel complesso, la fisiologia testicolare è una fisiologia della continuità coordinata. Il testicolo integra segnali centrali, metabolismo del colesterolo, funzione sertoliana, compartimentazione barriera-dipendente e feedback endocrini per produrre un output androgenico e germinale stabile ma adattabile. Questa visione è indispensabile per comprendere il significato endocrinologico della compartimentazione testicolare, tema che costituisce un punto di distinzione fondamentale rispetto ad altre ghiandole endocrine periferiche.
Significato endocrinologico della compartimentazione testicolare
La compartimentazione testicolare è il concetto che più di ogni altro distingue il testicolo nel sistema endocrino. La presenza di un compartimento interstiziale a diretto contatto con il sangue e di un compartimento tubulare protetto dalla barriera emato-testicolare fa sì che l’organo possa svolgere contemporaneamente una funzione endocrina sistemica e una funzione riproduttiva altamente selettiva. Questa organizzazione non è una semplice separazione spaziale, ma un principio fisiologico di regolazione: permette al testicolo di mantenere nel sangue livelli adeguati di androgeni e, al tempo stesso, di creare all’interno dei tubuli condizioni biochimiche e immunologiche diverse da quelle del compartimento vascolare.
Dal punto di vista endocrinologico, la compartimentazione introduce una cinetica peculiare nel rapporto tra segnale ormonale e risposta biologica. Il testosterone sintetizzato dalle cellule di Leydig entra rapidamente nel circolo, ma la sua azione sulla spermatogenesi dipende dalla capacità del compartimento tubulare di trattenerlo, concentrarlo e integrarlo con i segnali delle cellule di Sertoli. In altri termini, l’output endocrino sistemico e quello intratesticolare non sono perfettamente sovrapponibili. Questa asimmetria spiega perché alterazioni relativamente modeste del testosterone sierico possano talvolta associarsi a una rilevante compromissione germinale, o viceversa perché una steroidogenesi sistemica ancora conservata non garantisca necessariamente una spermatogenesi efficiente.
La barriera emato-testicolare svolge un ruolo centrale in questo assetto. Dividendo l’epitelio seminifero in un compartimento basale e in uno adluminale, essa consente che le cellule germinali meiotiche e post-meiotiche si sviluppino in un ambiente a permeabilità selettiva e a controllo sertoliano. Tale barriera non ha solo funzione di esclusione immunologica. Essa regola il transito di molecole, contribuisce alla sincronizzazione della maturazione germinale e permette il mantenimento di un microambiente metabolicamente distinto. In questo senso, la barriera è una struttura endocrinologica oltre che istologica, perché rende possibile l’efficacia locale del segnale androgenico e la progressione ordinata della spermatogenesi.
La compartimentazione svolge anche una funzione di protezione rispetto alle variazioni acute dell’ambiente sistemico. Il compartimento adluminale dei tubuli non riflette in modo immediato tutte le oscillazioni plasmatiche di metaboliti, mediatori infiammatori o cellule immunitarie, e ciò conferisce robustezza alla linea germinale. Questa relativa autonomia, tuttavia, non è assoluta: la funzione tubulare rimane dipendente dall’interstizio, dal flusso ematico e dallo stato endocrino generale. Il risultato è un sistema che tende a preservare la spermatogenesi attraverso filtrazione, selezione e regolazione locale, ma che resta vulnerabile quando l’alterazione sistemica è intensa, prolungata o coinvolge direttamente le cellule somatiche di sostegno.
Un aspetto di alto rilievo è che la compartimentazione collega microanatomia, endocrinologia e semeiotica funzionale. La densità dell’interstizio, l’integrità del tubulo, la maturazione delle Sertoli e la continuità della barriera rappresentano la traduzione morfofunzionale della capacità testicolare di integrare produzione ormonale e maturazione germinale. Quando questo equilibrio si altera, la linea germinale tende a perdere per prima efficienza, mentre il compartimento leydigiano può mostrare una maggiore resilienza relativa. Questa dissociazione parziale tra funzione esocrina e funzione endocrina è una chiave interpretativa essenziale della fisiologia e della patologia gonadica maschile.
In sintesi, la compartimentazione testicolare rappresenta un principio fisiologico centrale: separa per proteggere, concentra per rendere efficace il segnale androgenico locale, stabilizza il microambiente germinale e consente al testicolo di essere simultaneamente ghiandola endocrina sistemica e organo della gametogenesi. Comprendere il significato endocrinologico di questa compartimentazione consente di leggere il testicolo come organo progettato per la cooperazione tra domini biologici differenti ma inseparabili.
Integrazione funzionale e limiti interpretativi della fisiologia testicolare
Il testicolo può essere compreso correttamente solo se anatomia, istologia e fisiologia vengono lette come parti di un unico sistema integrato. La funzione gonadica non emerge da un solo livello di controllo, ma dalla cooperazione tra organizzazione tubulare, compartimento interstiziale, barriera emato-testicolare, perfusione vascolare, termoregolazione scrotale e regolazione dell’asse ipotalamo-ipofisi-gonade. Ogni livello contribuisce a stabilizzare l’output androgenico e la spermatogenesi, trasformando un controllo apparentemente lineare in un sistema adattativo complesso.
Un primo elemento di integrazione riguarda il rapporto tra struttura e tempo. La spermatogenesi è un processo lungo, continuo e plurifasico, mentre la steroidogenesi può variare su scale temporali più brevi in risposta al segnale LH. Il testicolo, quindi, combina una funzione endocrine relativamente dinamica con una funzione germinale che richiede continuità di supporto per settimane. La conseguenza clinica è che modificazioni endocrine acute e modificazioni della qualità spermatogenetica non seguono necessariamente la stessa tempistica, e la fisiologia del testicolo deve essere interpretata tenendo conto di questa diversa inerzia biologica dei suoi compartimenti.
Un secondo livello di integrazione è rappresentato dal fatto che l’azione testicolare effettiva non coincide sempre con la sola secrezione ormonale nel sangue. Il testicolo garantisce testosterone al circolo sistemico, ma produce anche un ambiente androgenico intratesticolare e una rete di segnali paracrini che non sono direttamente catturati da un singolo parametro sierico. Ne deriva che il profilo funzionale finale è il risultato di un equilibrio tra segnale centrale, risposta delle cellule di Leydig, maturità delle cellule di Sertoli, integrità del microambiente tubulare e risposta dei tessuti bersaglio periferici. Questa distribuzione del controllo spiega perché parametri apparentemente simili possano associarsi a quadri clinici molto diversi.
I limiti interpretativi della fisiologia testicolare emergono chiaramente quando si tenta di ridurre la funzione gonadica a un singolo valore numerico. La lettura isolata del testosterone sierico, dell’FSH o della sola morfologia testicolare non restituisce la complessità del sistema, perché non tiene conto della compartimentazione, della temperatura, della cronologia della spermatogenesi e del contesto metabolico generale. Il testicolo è sensibile allo stato nutrizionale, all’obesità, all’infiammazione sistemica, ai farmaci, allo stress e all’età, condizioni che possono modificare la funzione endocrine o germinale con combinazioni molto differenti. In questi contesti, la gonade maschile partecipa a risposte adattative dell’organismo e non sempre rappresenta il sito esclusivo o primario dell’alterazione.
Dal punto di vista endocrinologico, è quindi essenziale distinguere tra funzione testicolare come capacità intrinseca dell’organo e azione testicolare come effetto biologico globale. La prima dipende dall’integrità anatomica, istologica, vascolare e termica del parenchima; la seconda dipende dall’integrazione con l’asse centrale, con la risposta periferica agli androgeni e con la conservazione della spermatogenesi. Questa distinzione concettuale permette di comprendere perché differenti condizioni cliniche possano produrre alterazioni biochimiche simili e perché l’interpretazione della funzione gonadica richieda sempre una valutazione contestuale e dinamica.
In conclusione, il testicolo è un organo endocrino e riproduttivo progettato per garantire continuità androgenica, maturazione germinale ordinata e adattamento controllato. La sua sede scrotale, l’organizzazione tubulo-interstiziale, la presenza della barriera emato-testicolare, l’istologia specializzata delle cellule di Sertoli e Leydig e la fisiologia basata su regolazione integrata costituiscono un insieme coerente. Questa cornice concettuale completa la comprensione del testicolo come organo e fornisce il fondamento necessario per affrontare, nelle pagine successive, l’asse ipotalamo-ipofisi-gonade, la steroidogenesi androgenica e le principali patologie endocrine e riproduttive del testicolo.
- Melmed S et al. Williams Textbook of Endocrinology. Elsevier. 14th edition, 2020.
- Hall JE. Guyton and Hall Textbook of Medical Physiology. Elsevier. 14th edition, 2021.
- O'Donnell L et al. Endocrinology of the Testis and Spermatogenesis. In: Endotext [Internet]. MDText.com, Inc. Updated 2026.
- Clavijo RI et al. Update on male reproductive endocrinology. Translational Andrology and Urology. 7(Suppl 3), 2018:S367-S372.
- Zirkin BR et al. Leydig cells: formation, function, and regulation. Biology of Reproduction. 99(1), 2018:101-111.
- Mruk DD et al. The Mammalian Blood-Testis Barrier: Its Biology and Regulation. Endocrine Reviews. 36(5), 2015:564-591.
- Petersen C et al. The Sertoli cell: a hormonal target and 'super' nurse for germ cells that determines testicular size. Hormone Research. 66(4), 2006:153-161.
- Sharpe RM et al. Proliferation and functional maturation of Sertoli cells, and their relevance to disorders of testis function in adulthood. Reproduction. 125(6), 2003:769-784.
- Haider SG. Cell biology of Leydig cells in the testis. International Review of Cytology. 233, 2004:181-241.
- Hofmann MC et al. Sertoli Cell-Germ Cell Interactions Within the Niche: Paracrine and Juxtacrine Molecular Communications. Frontiers in Endocrinology. 13, 2022:897062.
- Wanjari UR et al. Blood-testis barrier: a review on regulators in maintaining cell junction integrity between Sertoli cells. Cell and Tissue Research. 396, 2024:157-175.
- Li L et al. Hormone Regulation in Testicular Development and Function. International Journal of Molecular Sciences. 25(11), 2024:5929.
- Feng X et al. Sertoli cells as a hub in testicular development and male reproduction. Frontiers in Endocrinology. 16, 2025:1498994.
- Major AT et al. Anatomy, Endocrine Regulation, and Embryonic Development of the Rete Testis. Endocrine Reviews. 42(5), 2021:613-645.
- Visalli C et al. Intratesticular Vascular Architecture Seen by Ultrasound Microvascular Imaging: Anatomy and Clinical Correlates. Journal of Clinical Medicine. 12(18), 2023:5930.
Nota informativa: le informazioni contenute in questa pagina hanno esclusivamente finalità informative e divulgative e non sostituiscono il parere, la diagnosi o il trattamento di un medico. In caso di necessità, rivolgersi sempre a un professionista sanitario qualificato.
Trasparenza sull'intelligenza artificiale: questa pagina è stata realizzata con il supporto di strumenti di intelligenza artificiale, utilizzati come ausilio nella produzione e nell'elaborazione dei contenuti.